单纯疱疹病毒
单纯疱疹病毒
单纯疱疹病毒简介
单纯疱疹病毒1和2(HSV-1和HSV-2),也以其分类名称(Simplexvirus)而闻名,即人疱疹病毒1(HHV-1)和人疱疹病毒2(HHV-2),是单纯疱疹病毒(Simplexvirus)的两个典型代表。对大多数人来说,HSV-1(唇疱疹)和HSV-2(***疱疹)都很常见且具有传染性。 当感染者开始排出病毒时,它们可以传播。
50岁以下的世界人口中约有67%患有HSV-1。在美国,据信分别约有47.8%和11.9%的人患有HSV-1和HSV-2。因为它可以通过任何亲密接触传播,所以它是最常见的X传播感染之一。
病毒结构
单纯疱疹病毒结构
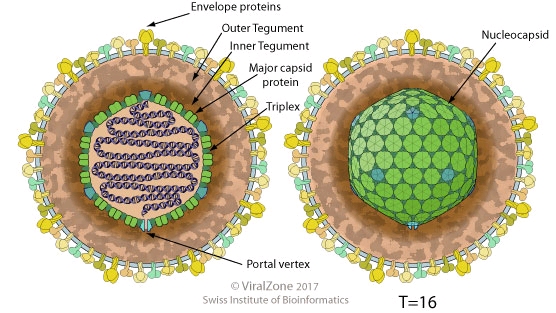
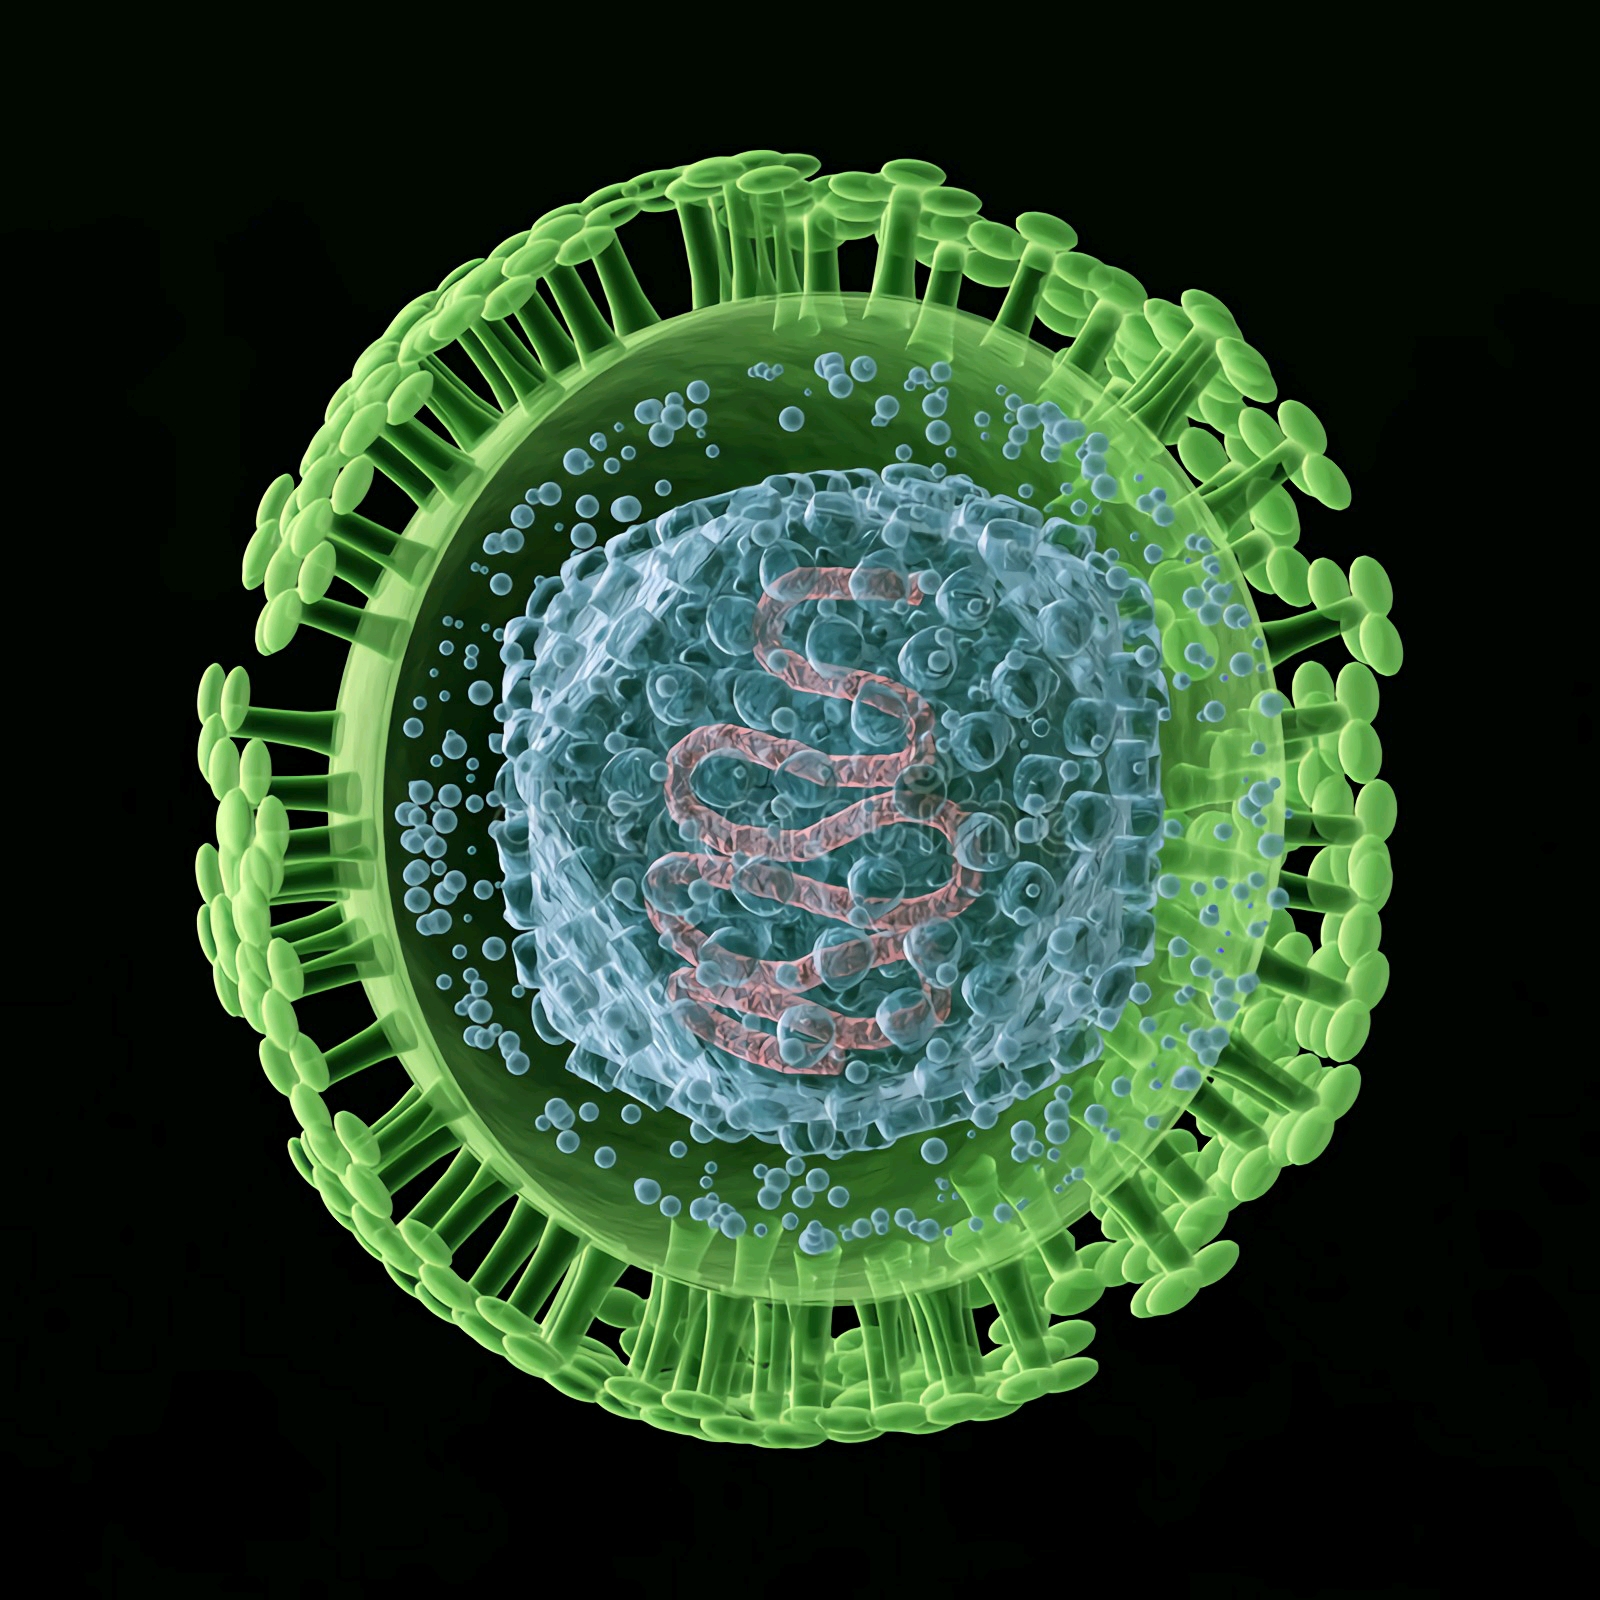
所有的疱疹病毒都具有一些共同的特性。 疱疹病毒的结构由包裹在称为衣壳的二十面体蛋白笼中的相对较大的双链线性DNA基因组组成,该笼被包裹在称为双层膜的脂质双层中。 信封通过皮套连接到衣壳。 这个完整的粒子被称为病毒体。HSV-1和HSV-2在其基因组中各自至少包含74个基因(或开放阅读框,ORF),尽管对基因拥挤的推测允许94个推定的ORF多达84个独特的蛋白质编码基因。这些基因编码多种蛋白质,这些蛋白质参与形成病毒的衣壳,外皮和包膜,并控制病毒的复制和感染性。
单纯疱疹病毒DNA
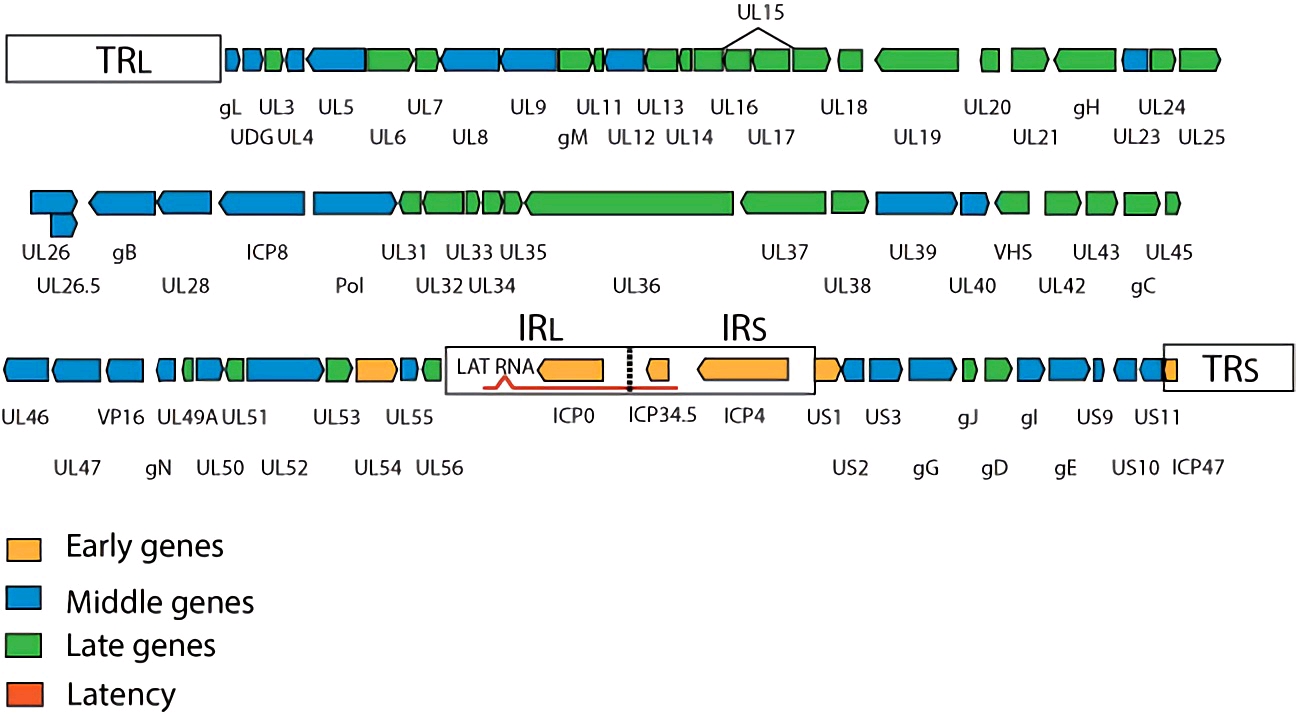
HSV-1和HSV-2的基因组很复杂,包含两个独特的区域,分别称为长独特区域(UL)和短独特区域(US)。 在74个已知的ORF中,UL包含56个病毒基因,而US仅包含12个。感染宿主的RNA聚合酶II催化HSV基因的转录。感染后首先表达的立即早期基因编码调节早期和晚期病毒基因表达的蛋白质。 随后进行早期基因表达,以便合成涉及DNA复制的酶并产生某些包膜糖蛋白。 晚期基因的表达发生在最后。 这组基因主要编码形成病毒粒子的蛋白质。
HSV衣壳结构
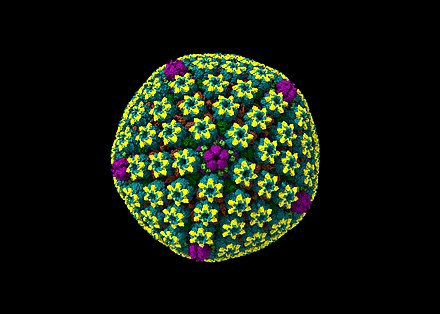
来自(UL)的五种蛋白质形成病毒衣壳——UL6,UL18,UL35,UL38和主要衣壳蛋白UL19。
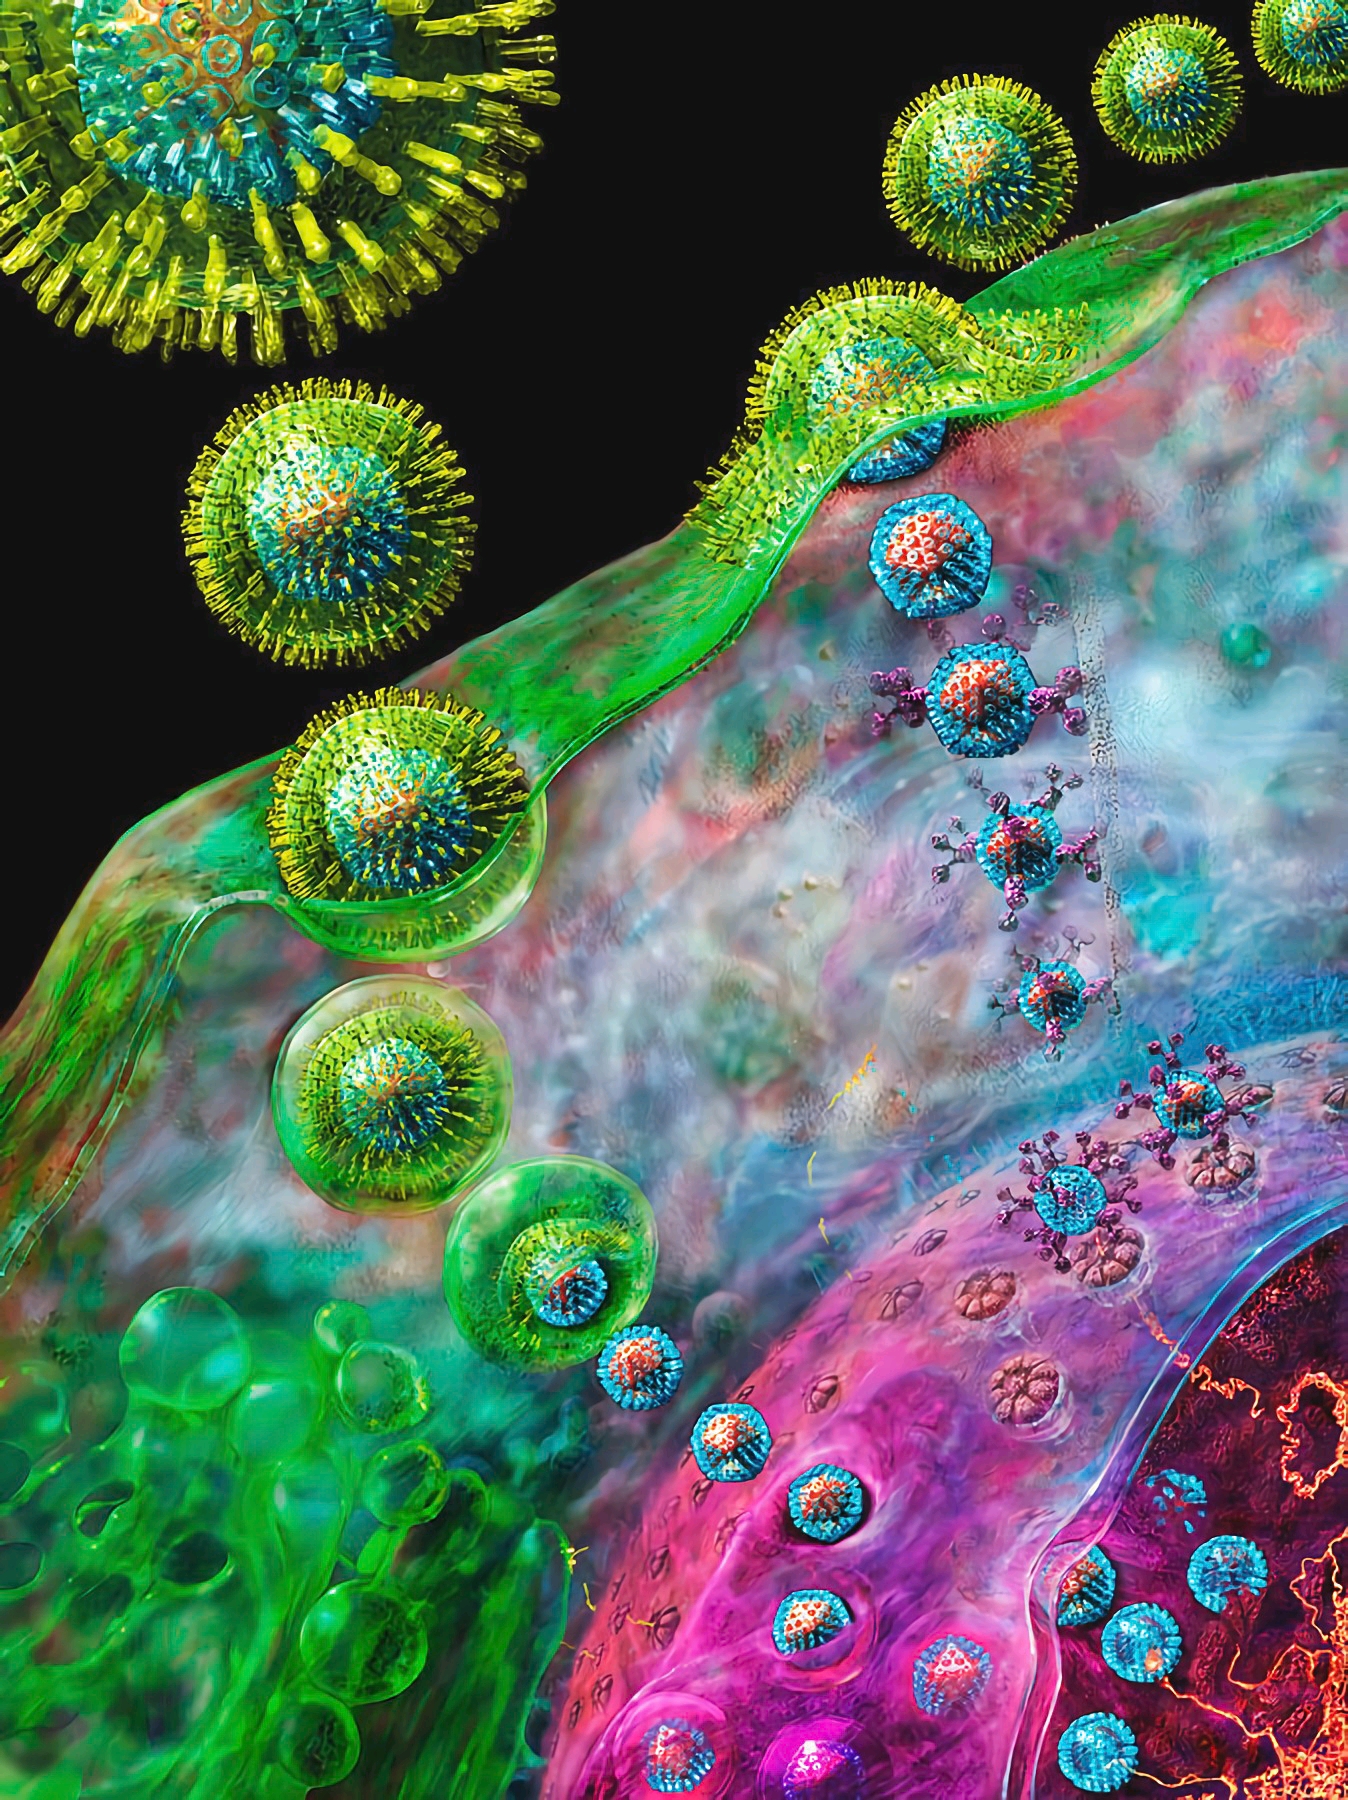
HSV进入宿主细胞涉及包膜病毒表面的几种糖蛋白与它们在细胞表面的跨膜受体结合。 这些受体中的许多然后被细胞向内拉动,据信这会打开三个gH、gL异二聚体的环,从而稳定gB糖蛋白的紧密构象,从而使其弹出并刺穿细胞膜。然后,覆盖病毒颗粒的包膜与细胞膜融合,形成一个孔,病毒包膜的内容物通过该孔进入宿主细胞。
HSV入侵阶段类似于其他包膜病毒。 首先,病毒和细胞表面上的互补受体使病毒和细胞膜接近。 这些分子的相互作用然后形成稳定的进入孔,病毒包膜内容物通过该进入孔被引入宿主细胞。 病毒也可以在与受体结合后被内吞,融合可能发生在内体。 在电子显微镜下,病毒和细胞脂质双分子层的外部小叶已被合并; 这种半融合可能是进入的通常路径,或者通常是比短暂进入机制更容易被捕获的停滞状态 。
在疱疹病毒中,当两个称为糖蛋白C(gC)和糖蛋白B(gB)的病毒包膜糖蛋白结合到称为硫酸乙酰肝素的细胞表面颗粒上时,就会发生初始相互作用。 接下来,主要的受体结合蛋白糖蛋白D(gD)与三种已知的进入受体中的至少一种特异性结合。这些细胞受体包括疱疹病毒进入介体(HVEM),nectin-1和3-O硫酸乙酰肝素。Nectin受体通常产生细胞间粘附单纯疱疹病毒,为病毒与宿主细胞的结合提供强点。这些相互作用使膜表面相互接近,并允许嵌入病毒膜中的其他糖蛋白与其他细胞表面分子相互作用。 一旦与HVEM结合,gD就会改变其构象并与形成复合物的病毒糖蛋白H(gH)和L(gL)相互作用。 这些膜蛋白的相互作用可能导致半融合状态。gB与gH / gL复合物的相互作用为病毒衣壳创造了进入孔,其中gB与宿主细胞表面的糖胺聚糖相互作用。
蝌蚪病毒注射器
病毒衣壳进入细胞质后,被转运到细胞核。 衣壳一旦附着在核进入孔的核上,便会通过蝌蚪病毒注射器弹出其DNA内含物。蝌蚪病毒注射器是由12个拷贝的门户蛋白UL6(呈环状排列)形成的; 这些蛋白质包含氨基酸的亮氨酸拉链序列,使它们彼此粘附。每个二十面体衣壳包含一个入口,位于一个顶点。DNA在单个线性段中离开衣壳
HSV通过阻断与HSV分泌ICP-47诱导的抗原加工(TAP)相关的转运蛋白,从而干扰MHC I类抗原在细胞表面的呈递,从而逃避免疫系统。 在宿主细胞中,TAP将消化的病毒抗原表位肽从胞质溶胶转运到内质网,使这些表位与MHC I类分子结合并呈递到细胞表面。I类MHC的病毒表位呈递是激活细胞毒性T淋巴细胞(CTL)的必要条件,CTL是细胞介导的针对病毒感染细胞的免疫反应的主要效应物。 ICP-47阻止了针对HSV的CTL反应的启动,从而使病毒能够在宿主体内延长生存期。
病毒的复制
HSV感染细胞后,会产生一连串的疱疹病毒蛋白,称为早期,早期和晚期。 使用流式细胞术对疱疹病毒家族的另一个成员卡波西氏肉瘤相关疱疹病毒进行的研究表明,有可能出现额外的裂解阶段单纯疱疹病毒,即延迟后期。晚期感染的这些阶段(尤其是晚期阶段)不同于潜伏期。 对于HSV-1,在潜伏期中未检测到蛋白质产物,而在裂解周期中却检测出了蛋白质产物。
转录的早期蛋白质用于调节病毒的基因复制。 进入细胞后,α-TIF蛋白会加入病毒颗粒并有助于立即早期转录。 病毒体宿主封闭蛋白(VHS或UL41)对病毒复制非常重要。该酶切断宿主中的蛋白质合成,降解宿主mRNA,帮助病毒复制并调节病毒蛋白质的基因表达。 病毒基因组立即到达细胞核,但VHS蛋白仍保留在细胞质中。
晚期蛋白质形成衣壳和病毒表面上的受体。 病毒颗粒的形成发生在细胞核中。 在此,病毒基因组的连接体通过切割分离并置于形成的衣壳中。 HSV-1经历一次和二次包封的过程。 初级包膜是通过萌芽进入细胞的内核膜而获得的。 然后,它与外核膜融合,将裸衣壳释放到细胞质中。 该病毒通过发芽进入细胞质囊泡而获得最终的包膜。
HSV可能以一种称为潜伏感染的静止但持久的形式持续存在,特别是在神经节中。HSV-1倾向于驻留在三叉神经节中,而HSV-2倾向于驻留在神经节中,但这仅是趋势,而不是固定的行为。 在潜伏感染细胞期间,HSV表达潜伏期相关转录本LAT-RNA。 LAT调节宿主细胞基因组并干扰自然细胞死亡机制。 通过维持宿主细胞,LAT表达可以保留病毒库,从而可以进行随后(通常是症状性的)周期性复发或非潜伏性的“爆发”。 不管复发是否有症状,都会发生病毒脱落,从而感染新的宿主。
神经元中发现的一种蛋白质可能与疱疹病毒DNA结合并调节潜伏期。 疱疹病毒DNA含有一种称为ICP4的蛋白质基因,它是与HSV-1溶血性感染相关的基因的重要反式激活因子。ICP4基因周围的元素与一种蛋白结合,该蛋白被称为人神经元蛋白神经元限制性沉默因子(NRSF)或人阻遏蛋白沉默转录因子(REST)。当与病毒DNA元件结合时,组蛋白去乙酰化会在ICP4基因序列的顶部发生,从而阻止该基因的转录起始,从而阻止了参与裂解周期的其他病毒基因的转录。另一种HSV蛋白可逆转ICP4蛋白合成。
HSV基因组
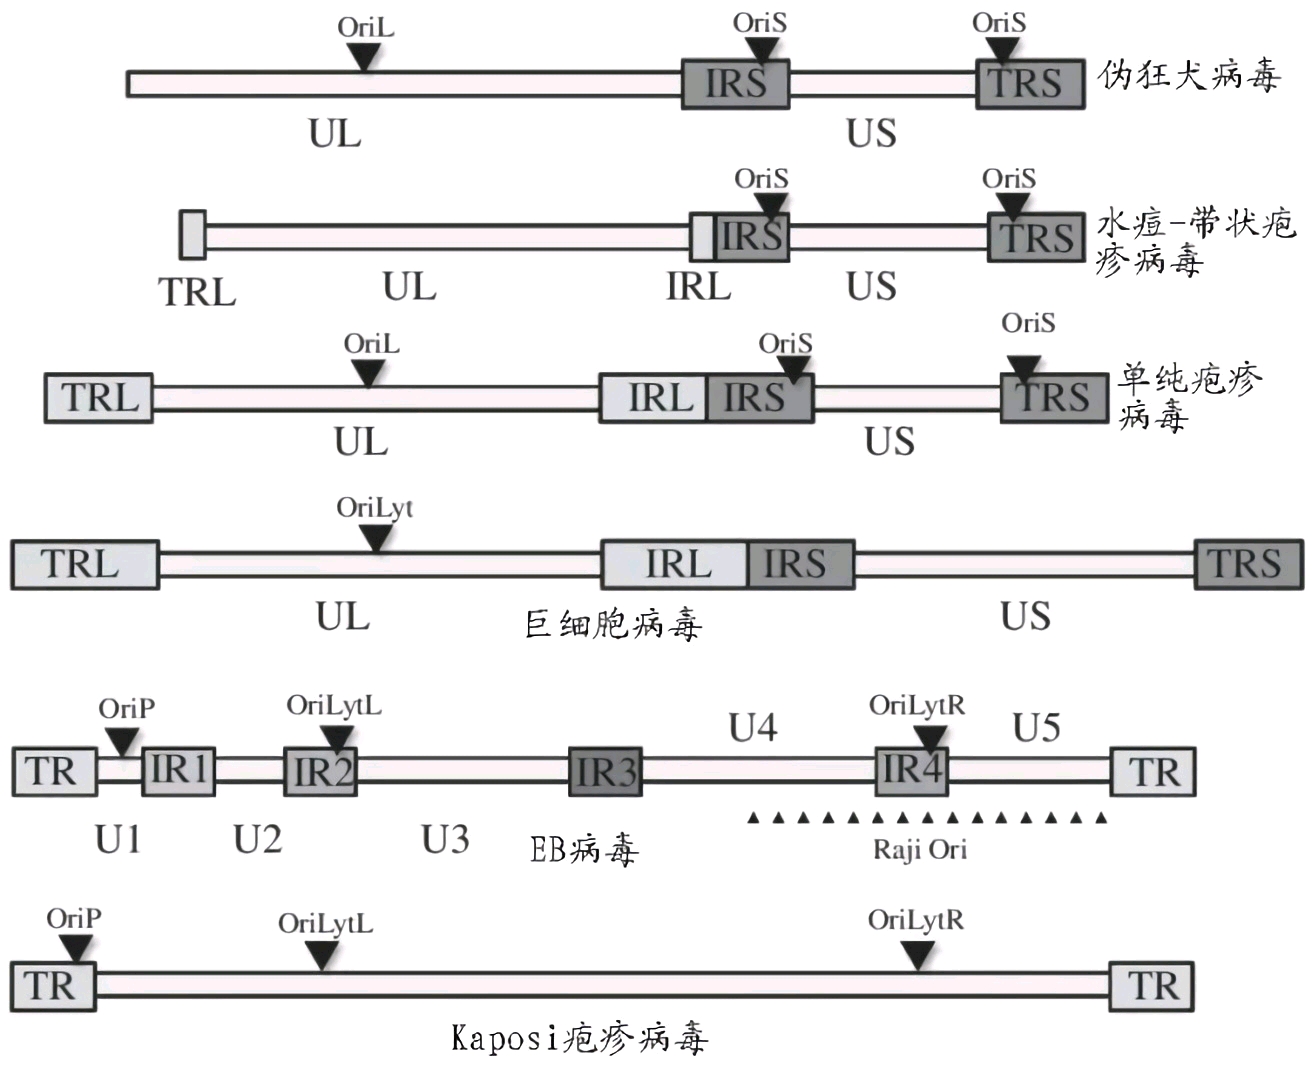
疱疹病毒基因组对比
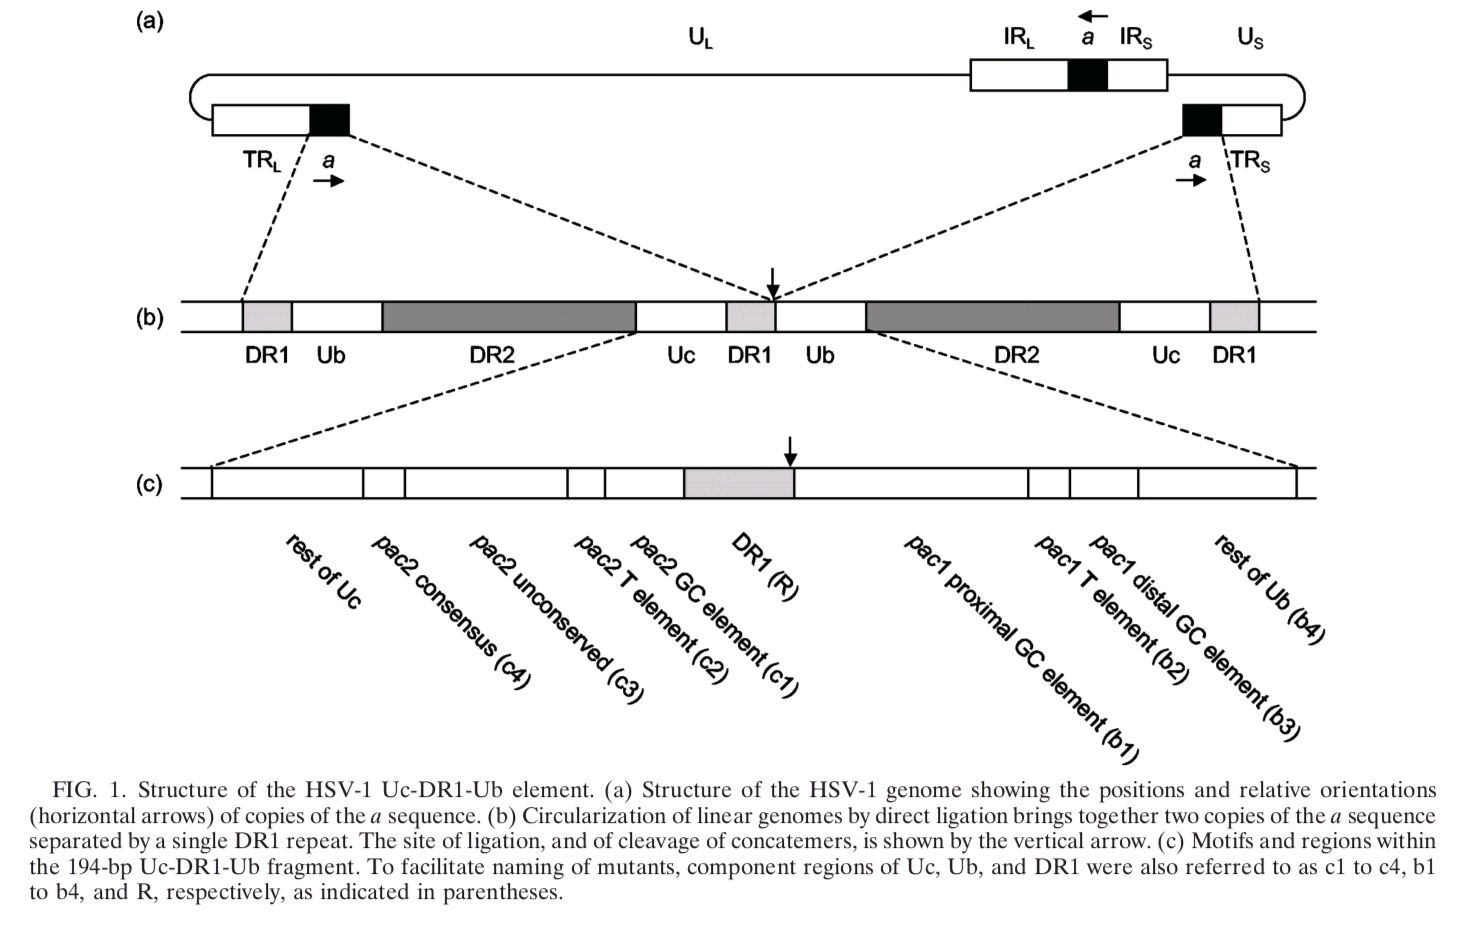
HSV包装序列
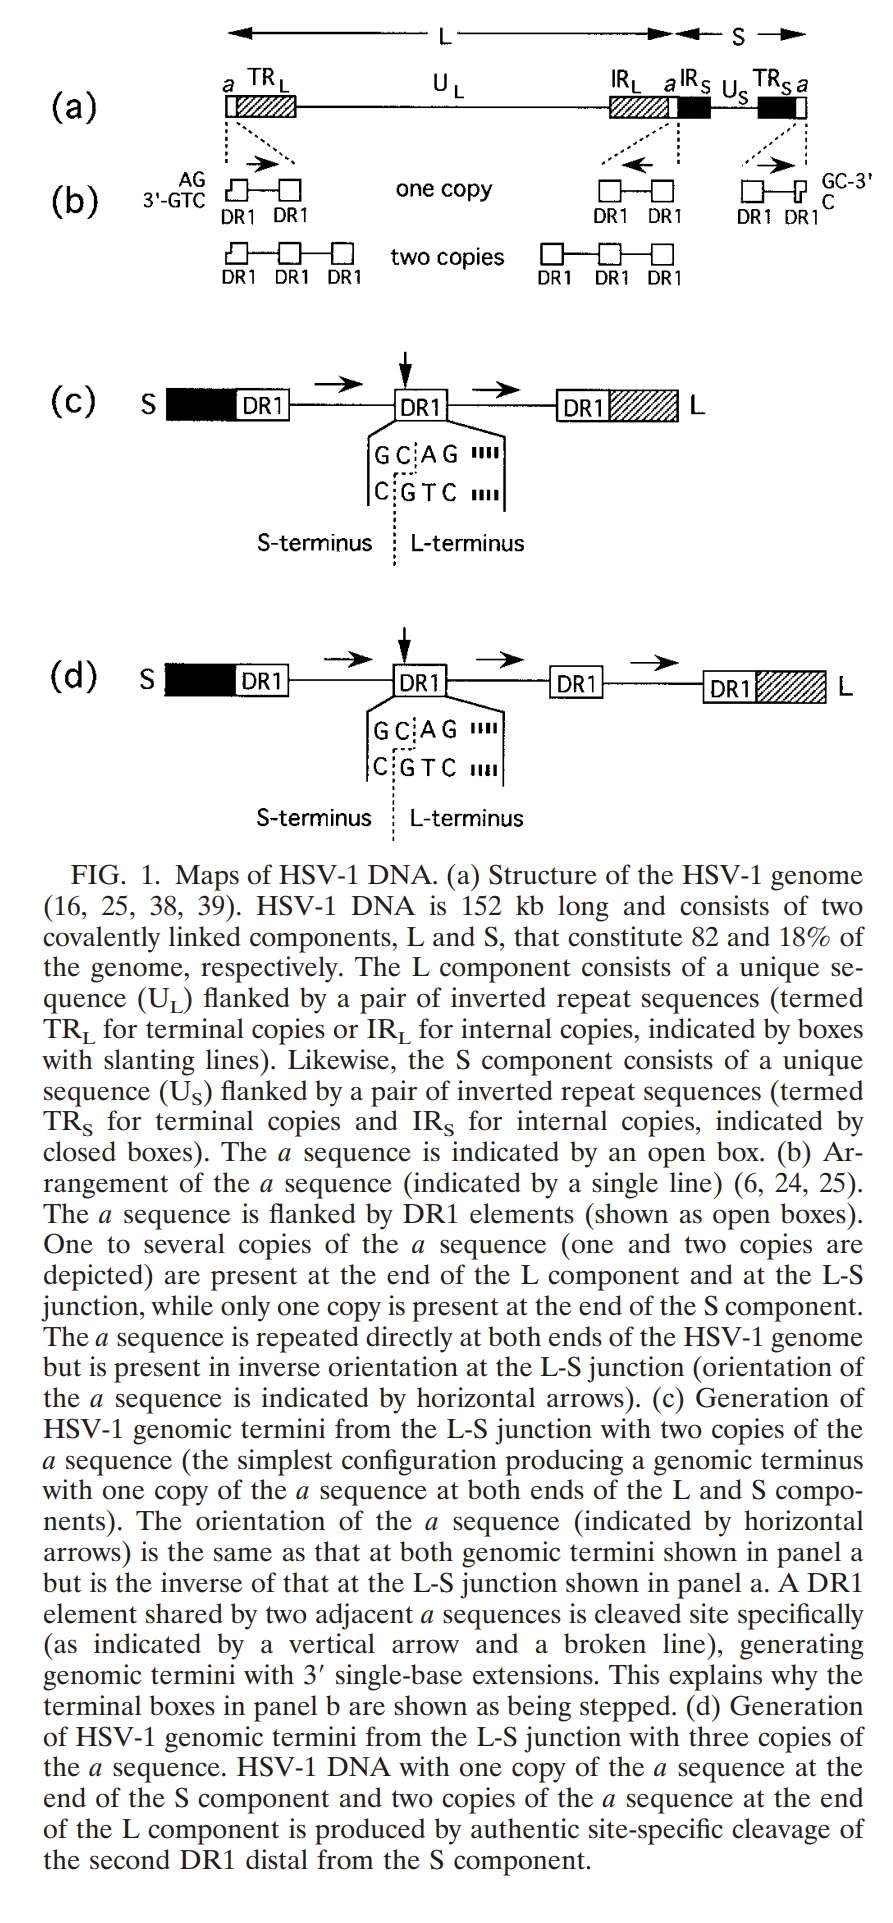
疱疹病毒DNA环化机理
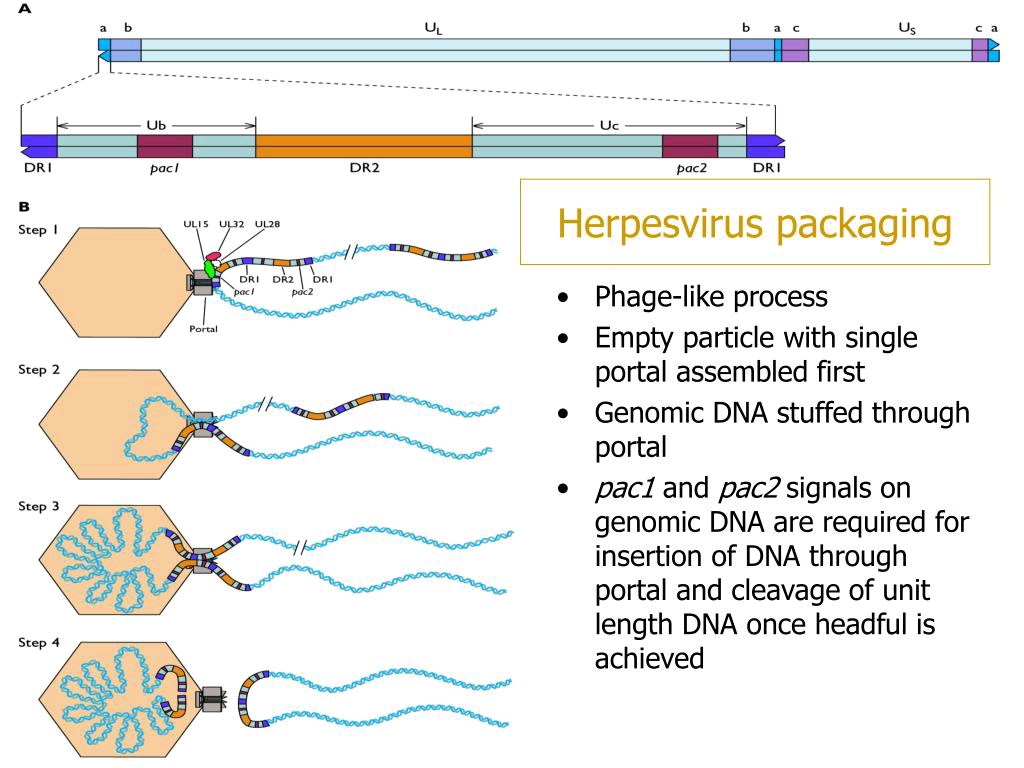
包装模型1
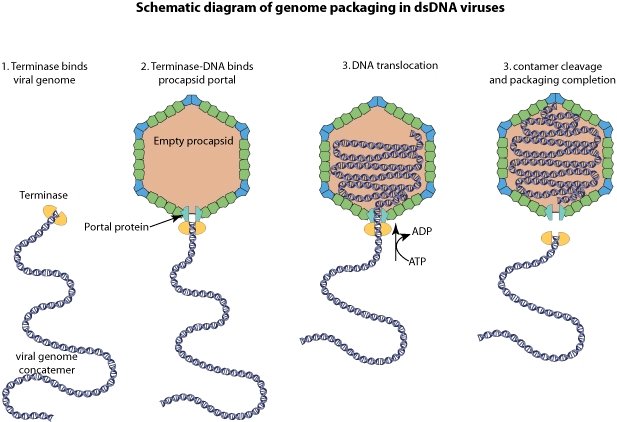
包装模型2
HSV基因组由两个独特的片段组成,分别称为独特长(UL)和独特短(US),以及在其两端发现的末端反向重复序列,称为重复长序列(RL)和重复短序列(RS)。 在RS的另一端也有一些小的“终端冗余”(α)元素。 整体布置为RL-UL-RL-α-RS-US-RS-α,每对重复彼此颠倒。 然后将整个序列封装在末端直接重复序列中。 长和短部分各有其自身的复制起点,OriL位于UL28和UL30之间,而OriS成对位于RS附近。由于L和S链段可以在任何方向上组装,因此它们可以相对于彼此自由地反转,从而形成各种线性异构体。
病毒进化论
单纯疱疹病毒1基因组可分为六个进化枝。其中有四个在东非,一个在东亚,一个在欧洲和北美,这表明该病毒可能起源于东非。欧亚菌株的最新共同祖先似乎已经进化到大约6万年前。东亚HSV-1分离株具有一种不寻常的模式,目前最好的解释是造成日本人死亡的两次移民浪潮。
单纯疱疹病毒的2个亚型可分为两类:一类是全球分布的,另一类主要限于撒哈拉以南非洲。呈全球分布的基因型已与单纯疱疹病毒1发生了4次古老的重组。也有报道说HSV-1和HSV-2在同时感染两种病原体的宿主中可以发生当代且稳定的重组事件。 所有这些病例都是HSV-2获得HSV-1基因组的一部分,有时在此过程中改变了其抗原表位的一部分。
据估计,突变率约为1.38×10^-7个置换/位点/年。在临床环境中,胸苷激酶基因(HSV-tk)或DNA聚合酶基因中的突变引起了对阿昔洛韦的耐药性。 然而,大多数突变发生在胸苷激酶基因而不是DNA聚合酶基因。
另一项分析估计,单纯疱疹病毒1型基因组的突变率是每个位点每年1.82×10^-8个核苷酸取代。 这项分析将这种病毒的最新祖先定为约71万年前。
单纯疱疹病毒1和2在大约600万年前分离了。
引发的疾病
许多被感染者从未出现症状。症状出现时,可能在嘴,嘴唇,鼻子或生殖器的皮肤或粘膜中出现水疱。病变具有疱疹性疾病的特征。 有时,病毒会在暴发期间引起轻微或非典型症状。 但是,它们也可能导致更麻烦的单纯疱疹。 作为嗜神经性病毒,HSV-1和HSV-2通过躲避神经元细胞体内的免疫系统而在体内持久存在。 在初次或初次感染后,一些感染者会偶发发作病毒再激活或爆发。 在一次暴发中,神经细胞中的病毒变得活跃,并通过神经元的轴突运输到皮肤,在那里病毒复制和脱落并引起新的疮痛。
病毒传播途径
HSV-1和HSV-2通过与感染了该病毒的人接触而传播。 HSV-2周期性地在人类生殖道中脱落,通常是无症状的。 大多数性传播发生在无症状脱落的时期。无症状重新激活意味着该病毒会引起非典型,细微或难以察觉的症状,这些症状未被鉴定为活动性疱疹感染,因此即使不存在明显的HSV水泡或疮,也可能获得该病毒。 在一项研究中,每日生殖器拭子样本发现暴发人群中HSV-2的天数中位数为12–28%,无症状感染者中为10%的天数,其中许多发作均不可见爆发(“亚临床脱落”)。
在另一项研究中,采用双向转换设计,随机将73名受试者随机接受每日1g伐昔洛韦或安慰剂治疗,每组60天。 通过聚合酶链反应自行收集每日拭子区域用于HSV-2检测,以比较伐拉昔洛韦和安慰剂对无免疫力,无症状生殖器疱疹感染史的HSV-2血清反应阳性的无症状病毒脱落的影响。 研究发现,与安慰剂相比,在亚临床日中,伐昔洛韦显着减少了脱落,显示减少了71%。 接受伐昔洛韦治疗的受试者中有84%没有脱落,而使用安慰剂的受试者中有54%。 大约有88%的接受伐昔洛韦治疗的患者没有明显的体征或症状,而安慰剂则为77%。
对于HSV-2,亚临床脱落可能是造成大部分传播的原因。对不和谐伴侣的研究(一个被HSV-2感染,另一个未被感染)表明,每10,000个性接触的传播率约为5。非典型症状通常归因于其他原因,例如真菌感染。HSV-1通常在儿童时期通过口腔获得。 它也可能是通过X传播的,包括与唾液的接触,例如接吻和口对xxx的接触。HSV-2主要是X传播感染,但HSV-1***感染的比率正在增加。
两种病毒也可能在分娩时垂直传播。但是,如果母亲在分娩过程中没有症状或没有水泡则感染传播的风险极小。 当母亲在妊娠晚期首次感染该病毒时,风险是相当大的。与流行的谣言相反,疱疹不能从马桶座等表面传播,因为疱疹病毒在离开人体后立即开始死亡。
单纯疱疹病毒可以影响接触感染者的皮肤区域(尽管与感染者握手不会传播这种疾病)。 例如带状疱疹,即手指上的疱疹感染。 这是在对患者进行治疗时常规使用手套之前牙科医生的一种常见病。
HSV-2感染会增加感染HIV的风险。
治疗
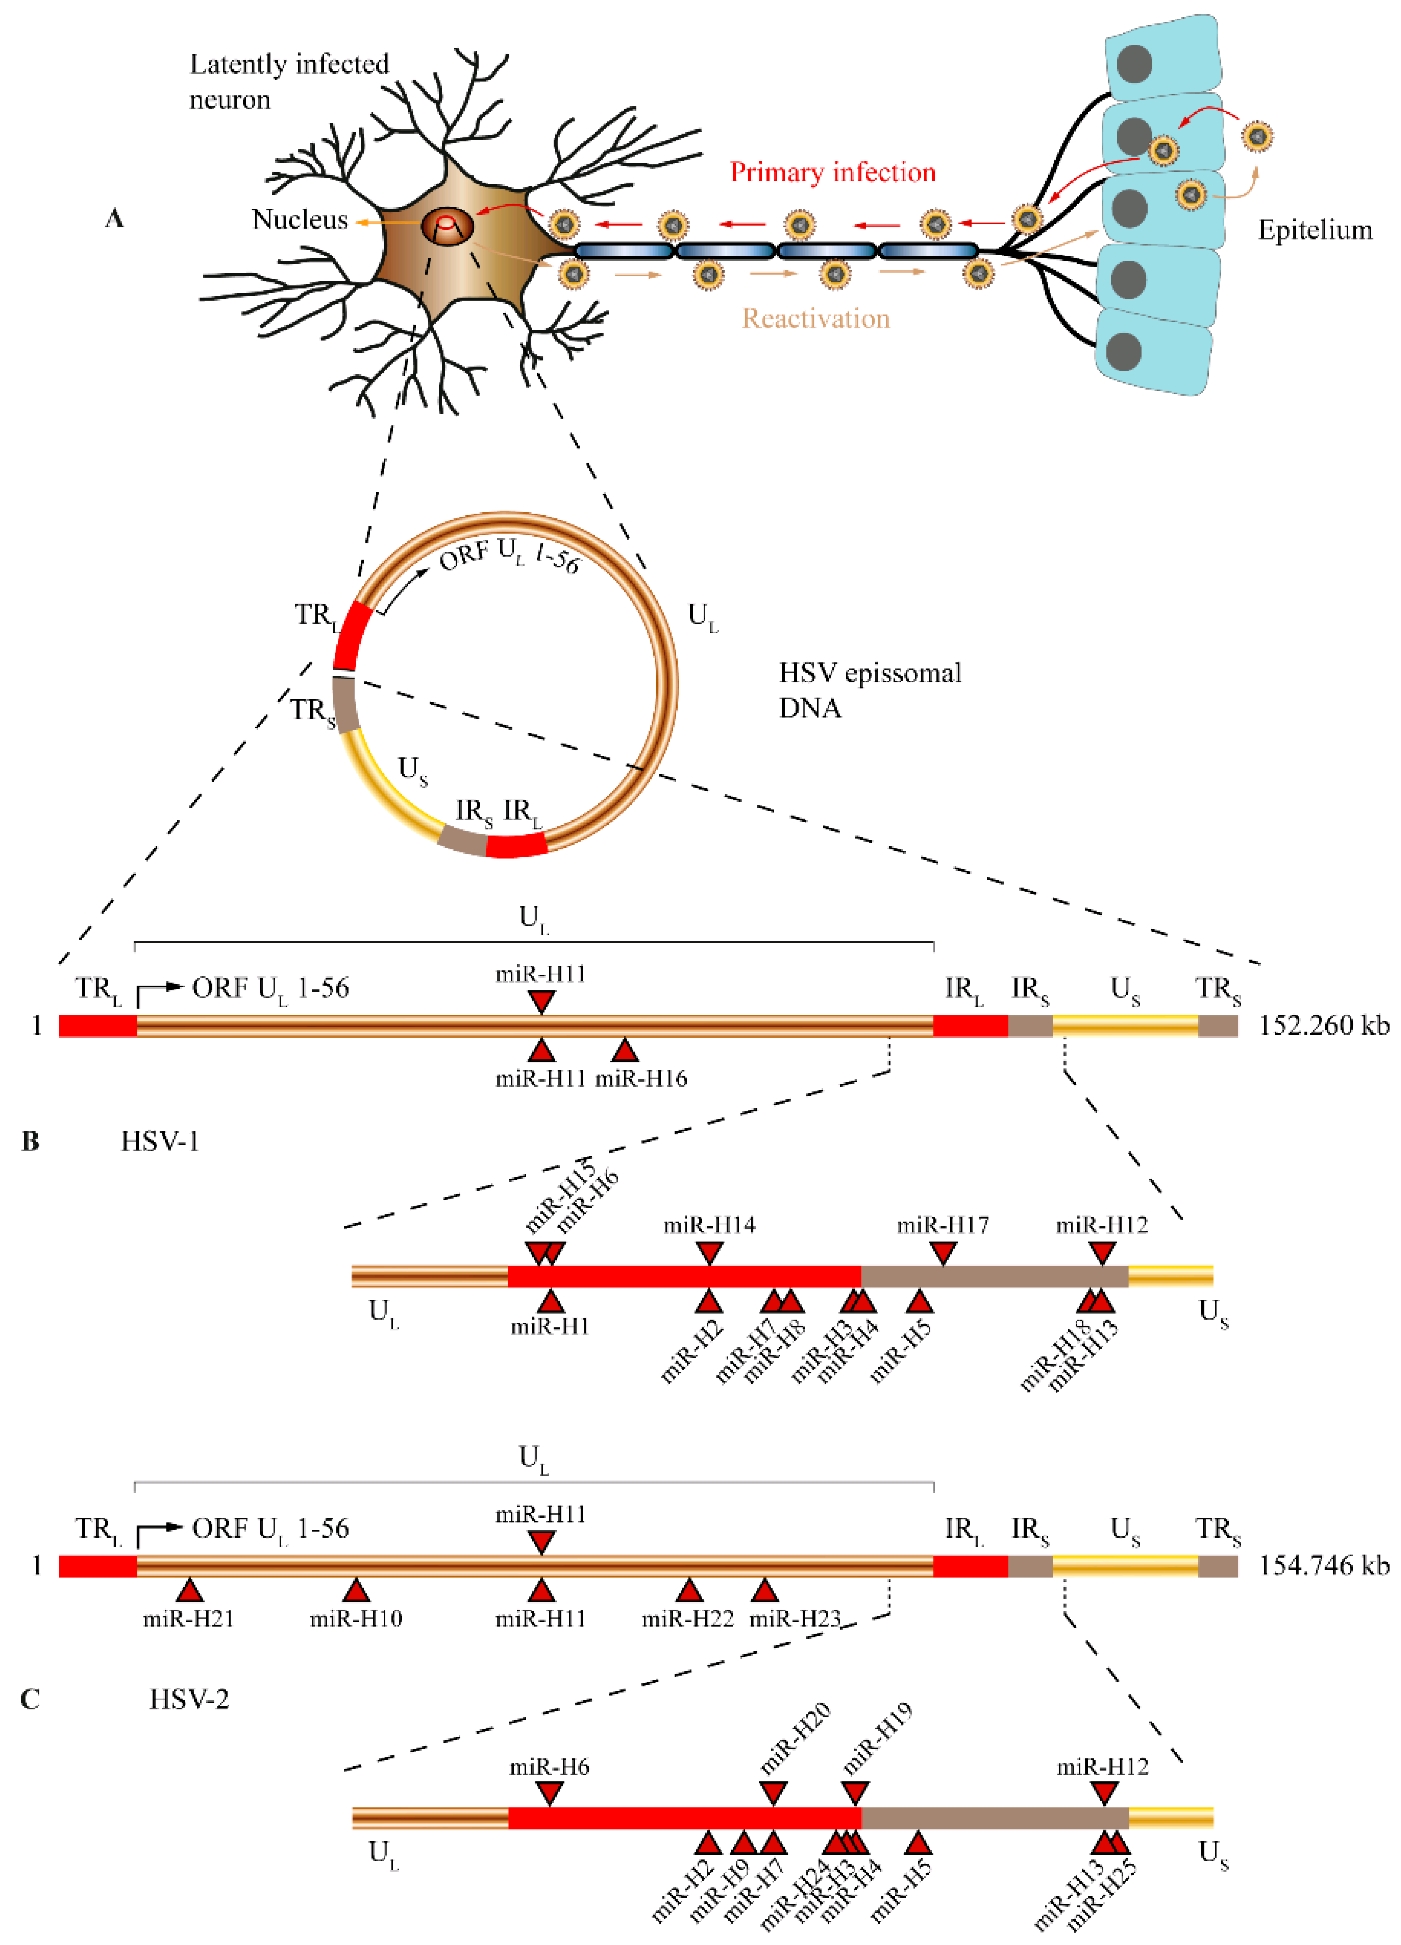
单纯疱疹病毒的环状DNA主要分布于神经元
疱疹病毒会建立终生感染(因此无法从体内消除)。
治疗通常涉及通用的抗病毒药物,这些药物会干扰病毒的复制,降低与疾病爆发有关的病变的物理严重性,并降低传播给他人的机会。 对易受伤害的患者人群的研究表明,每天使用抗病毒药,如阿昔洛韦和伐昔洛韦,可以降低再激活率。抗疱疹药的广泛使用导致了耐药性的发展,继而导致治疗失败。 因此,广泛研究了新的药物来源以解决该问题。2020年1月,发表了一篇全面的评论文章,论证了天然产物作为有前途的抗HSV药物的有效性。
吡咯烷酮(一种锌离子载体)显示出对单纯疱疹病毒的抗病毒活性。
多重激活
多重激活(MR)是一个过程,通过该过程,含有失活损伤的病毒基因组在感染的细胞内相互作用,形成了可行的病毒基因组。 MR最初是在大肠杆菌T4噬菌体中发现的,但后来也发现在动物病毒中,包括流感病毒,HIV-1,腺病毒,猿猴病毒40,痘苗病毒,呼肠孤病毒,脊髓灰质炎病毒和单纯疱疹病毒。
当HSV颗粒暴露于单次感染会致命的DNA破坏剂剂量后,却被允许进行多次感染(即每个宿主细胞感染两种或更多种病毒),就会观察到MR。 暴露于不同的DNA破坏剂(包括甲磺酸甲酯,三甲基补骨脂素(引起链间DNA交联)和紫外线会导致MR导致HSV-1存活率提高。用三甲基补骨脂素治疗遗传标记的HSV后,标记的病毒之间的重组增加,这表明三甲基补骨脂素的损伤会刺激重组。HSV的MR似乎部分取决于宿主细胞重组修复机制,因为该机制的一部分中的皮肤成纤维细胞(即来自Bloom综合征患者的细胞)缺乏MR。
这些观察结果表明,HSV感染中的MR涉及受损病毒基因组之间的基因重组,从而导致产生后代病毒。HSV-1感染宿主细胞后,会引起炎症和氧化应激。因此,似乎在感染过程中HSV基因组可能会遭受氧化性DNA损伤,而MR在这些条件下可能会提高病毒的存活率和毒力。
作为基因治疗的载体
由于单纯疱疹病毒DNA分子量比较大,因此可以用作基因治疗的载体。唯一的缺点是,如果宿主自身携带单纯疱疹病毒,有可能发生同源重组,导致单纯疱疹病毒复活,引发新一轮感染风暴
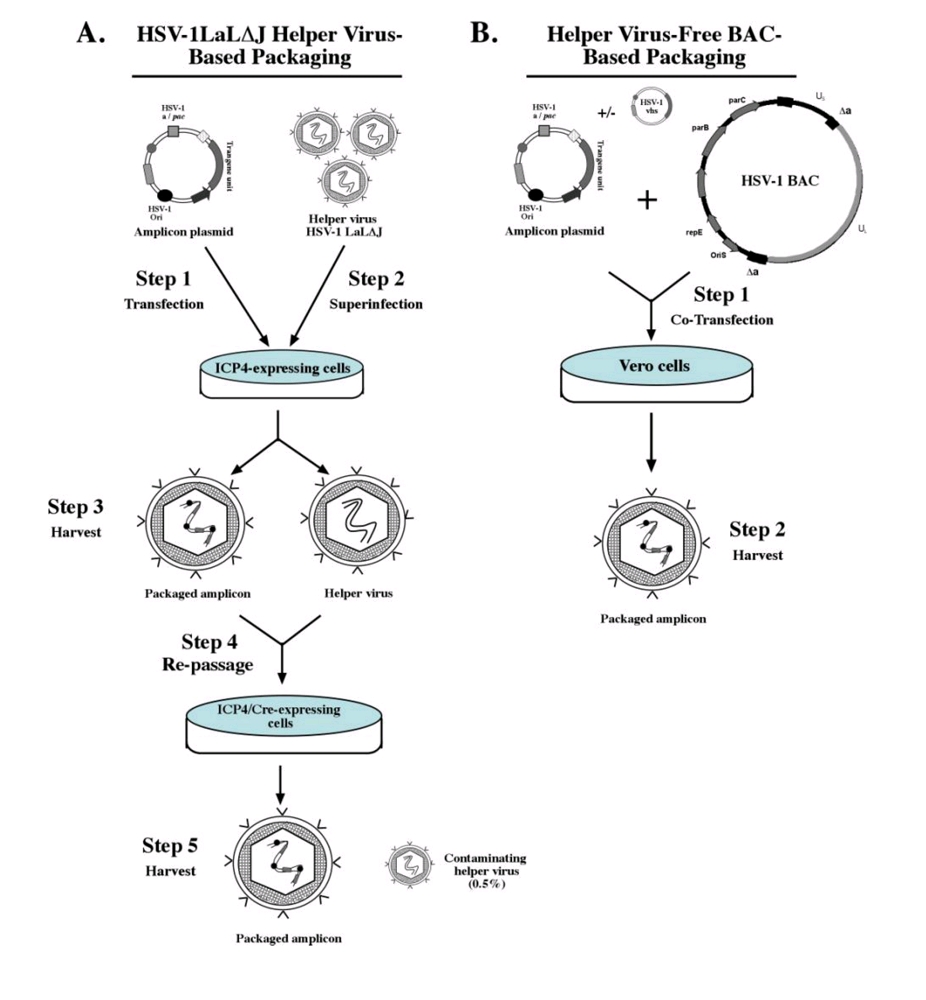
HSV载体
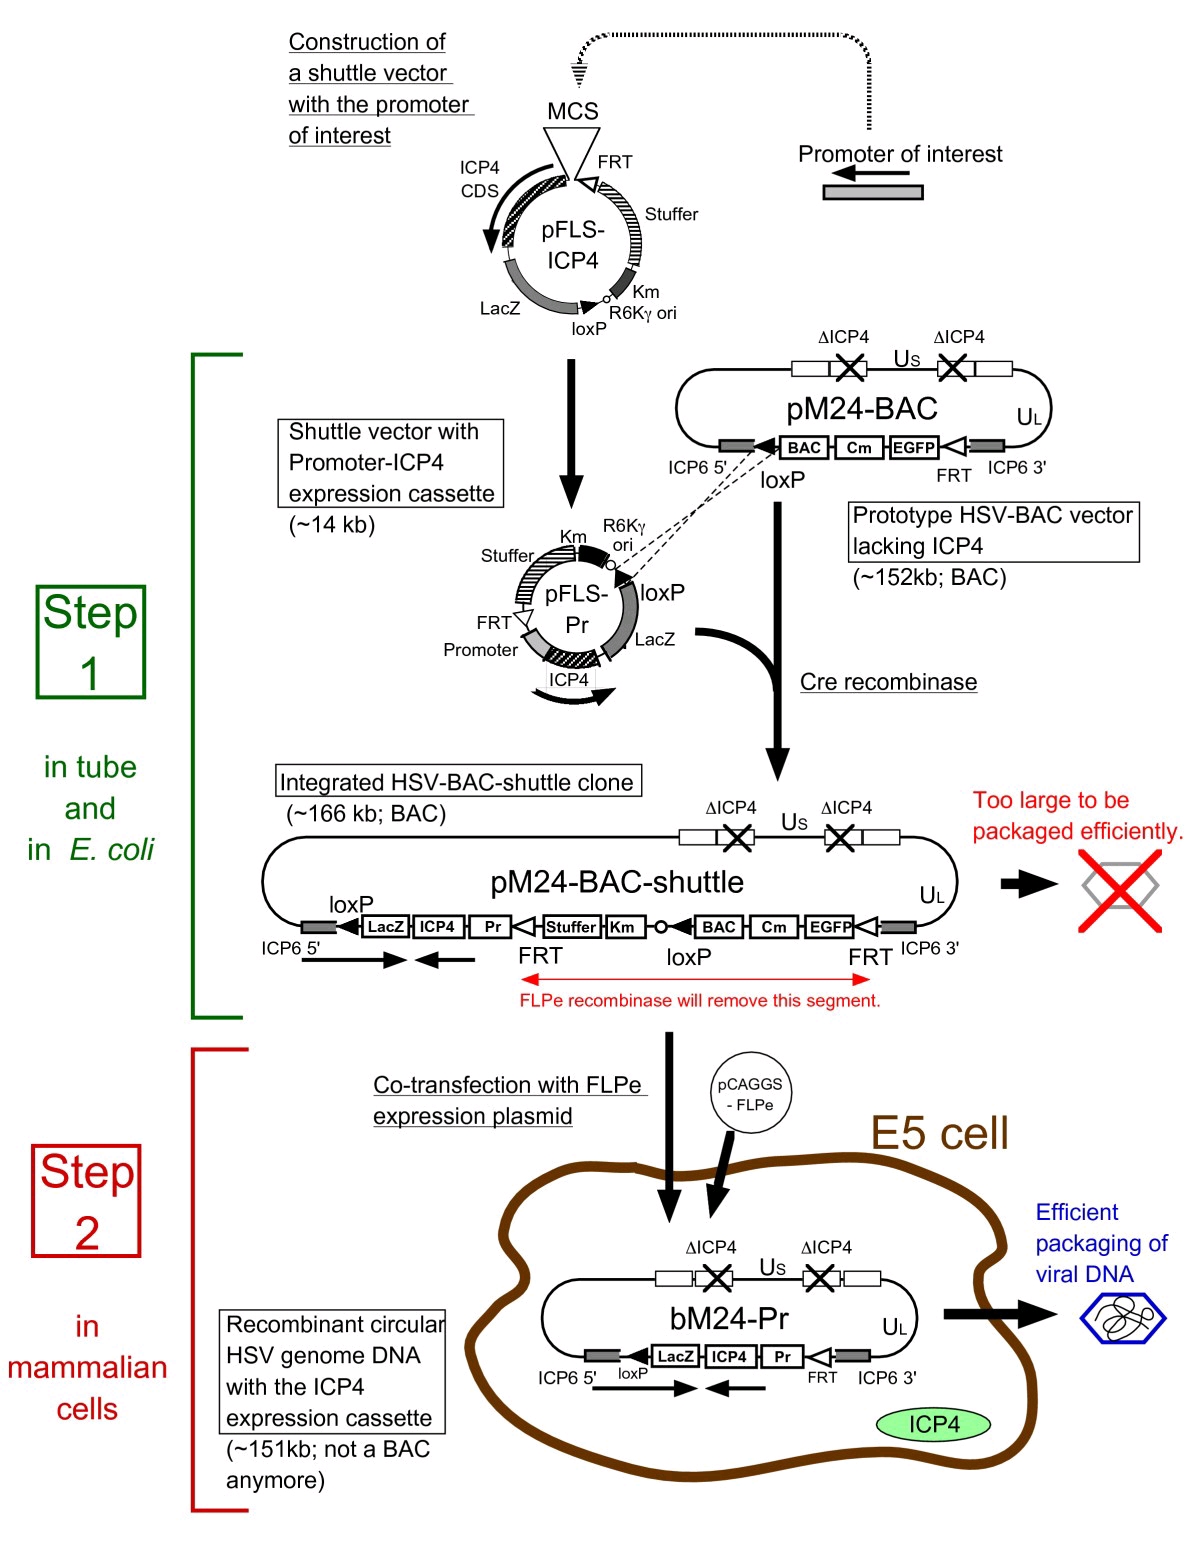
HSV载体制作过程
杜鹃:单纯疱疹病毒,我还得感谢你。
单纯疱疹病毒:WHY?
杜鹃:在我还是人类的时候,我将自己Y染色体上的SRY基因,替换为删除a序列的单纯疱疹病毒序列。我获得了超乎常人的神经反应能力,例如,我的双手的精度,比工业机器人的精度还要高60000倍。我还可以抓住子弹,并且让它原路返回,这是我唯一感谢你的地方。